 首页
 关于我们
 产品中心
 技术服务
 技术中心
 联系我们
导读
N⁶-甲基腺苷(m⁶A)是真核生物mRNA上最丰富且研究最透彻的化学修饰。该修饰在调控转录后RNA加工、结构动态、稳定性和翻译效率等生物学过程中发挥着核心作用。
在细胞质中,含有保守YTH结构域的阅读蛋白YTHDF2能够特异性识别m⁶A修饰并介导靶标mRNA发生降解。然而,体外生化实验表明YTHDF2对m⁶A修饰的固有结合亲和力相对较弱。
鉴于细胞内存在广泛分布的低化学计量比修饰位点,微弱的结合力提示YTHDF2在体内可能需要辅助蛋白的协助以稳定其与RNA的结合。同时,经典的Cys2-His2型锌指蛋白(C2H2-ZFPs)家族除了具有DNA结合活性外,近期也被发现广泛具备直接结合RNA的功能。
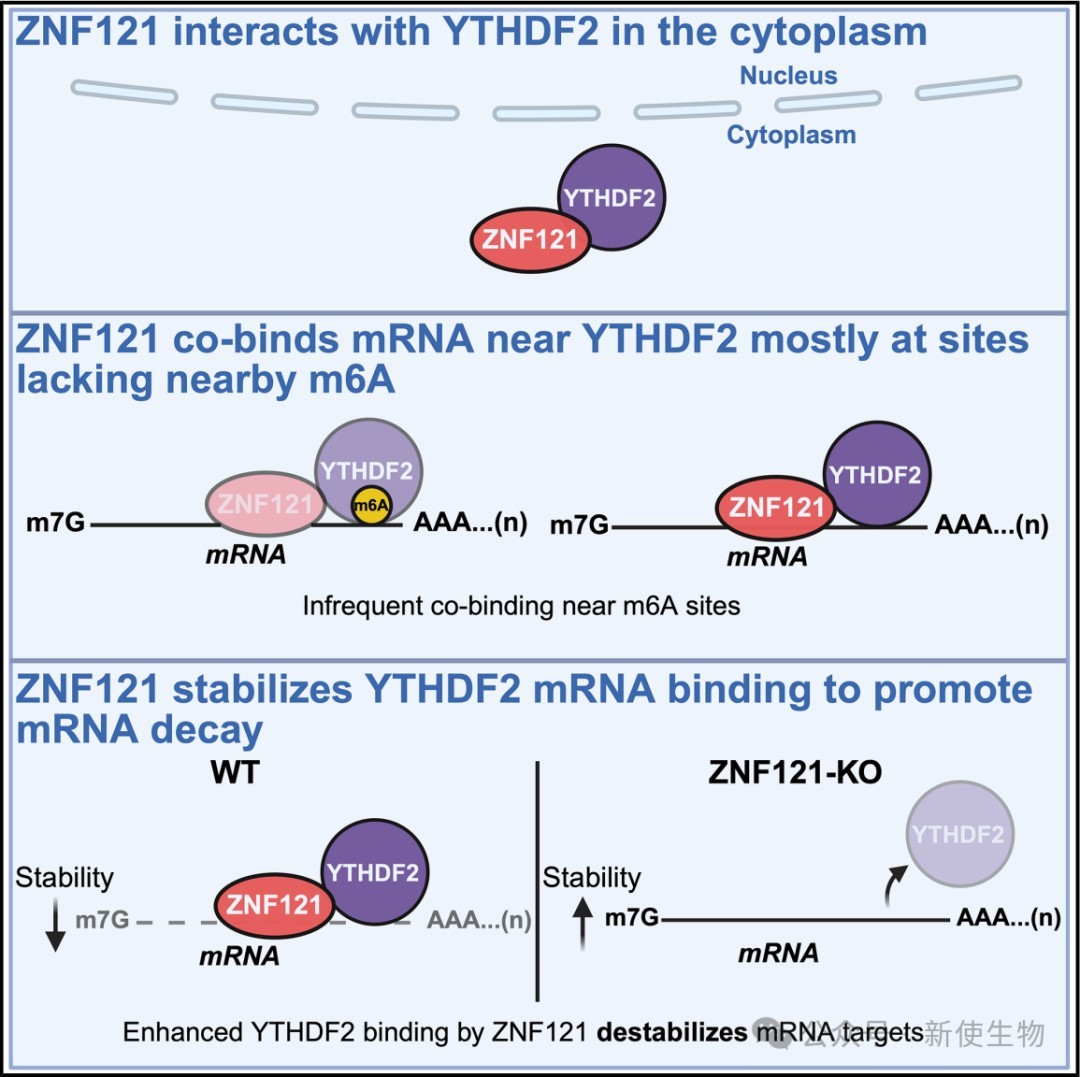
近日,多伦多大学Jack F. Greenblatt团队在Cell Reports上发表了题为“ZNF121 recruits YTHDF2 to modulate mRNA stability”的研究论文。该研究鉴定出一种新型辅因子ZNF121,它通过与YTHDF2物理互作,在细胞质中稳定YTHDF2与mRNA的结合,进而促进特定癌基因的降解,调节细胞周期和DNA损伤反应。
文章索引
【标题】ZNF121 recruits YTHDF2 to modulate mRNA stability
【发表期刊】Cell Reports
【发表日期】2026年9月22日
【作者及团队】多伦多大学Jack F. Greenblatt团队
【IF】7.7
研究结果
一、C2H2型锌指蛋白ZNF121与YTHDF2相互作用
通过AP-MS数据分析筛选出ZNF121与m⁶A阅读蛋白YTHDF2存在互作。
双向co-IP实验证实,这种相互作用在多种细胞系中稳定存在且发生于细胞质中,并且不受核酸酶处理的影响。
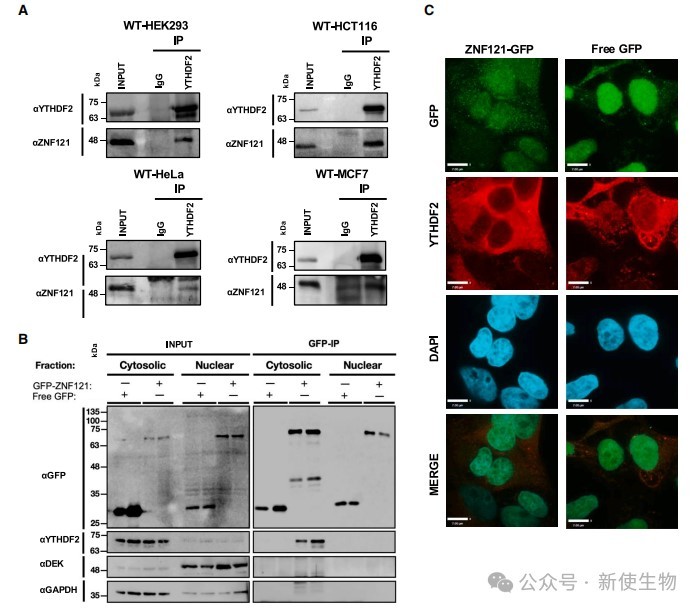
二、确定ZNF121与YTHDF2相互作用的关键结构域
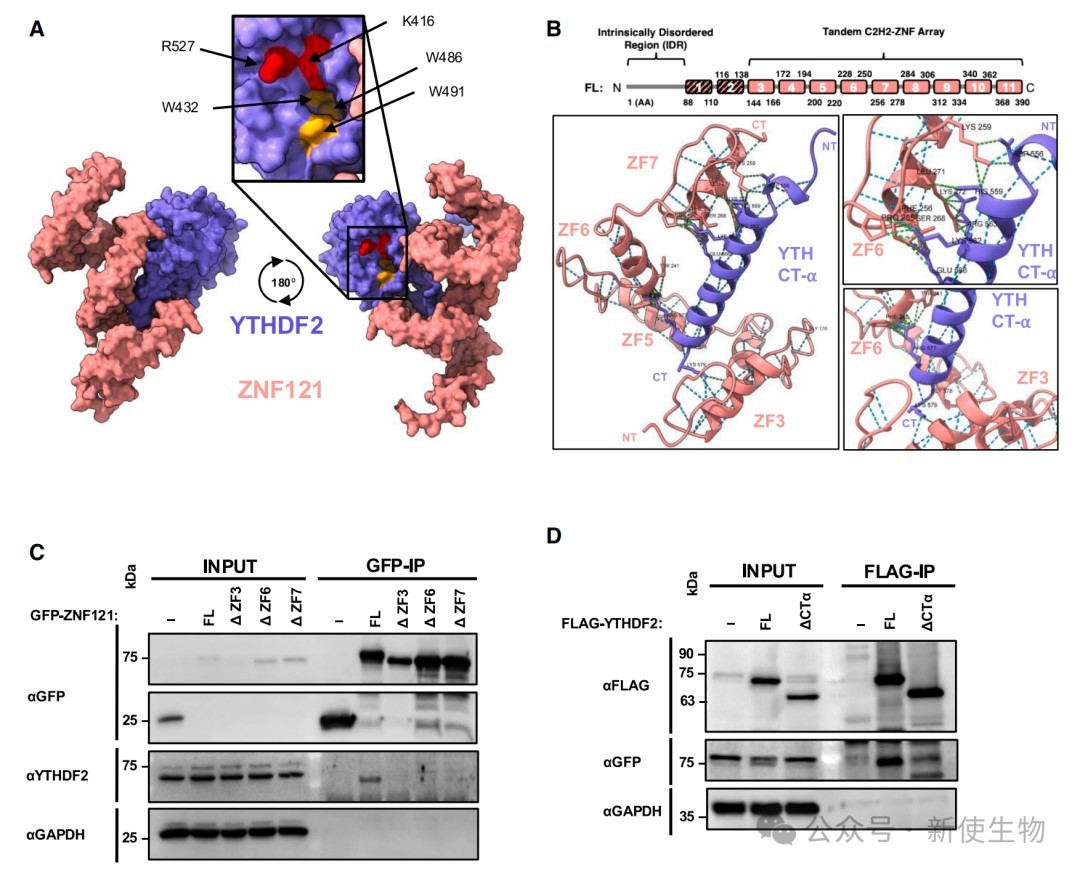
利用AlphaFold-Multimer结构预测及截短突变体分析,研究发现YTHDF2的C末端α螺旋(CTα)与ZNF121的第3、6、7个锌指结构域(ZnF)存在关键接触。
进一步验证表明,ZNF121的N端无序区并非互作必需区域,而CTα还参与介导YTHDF2与YTHDF1、YTHDF3的同源互作。
三、ZNF121结合mRNA并与YTHDF2在mRNA上共定位
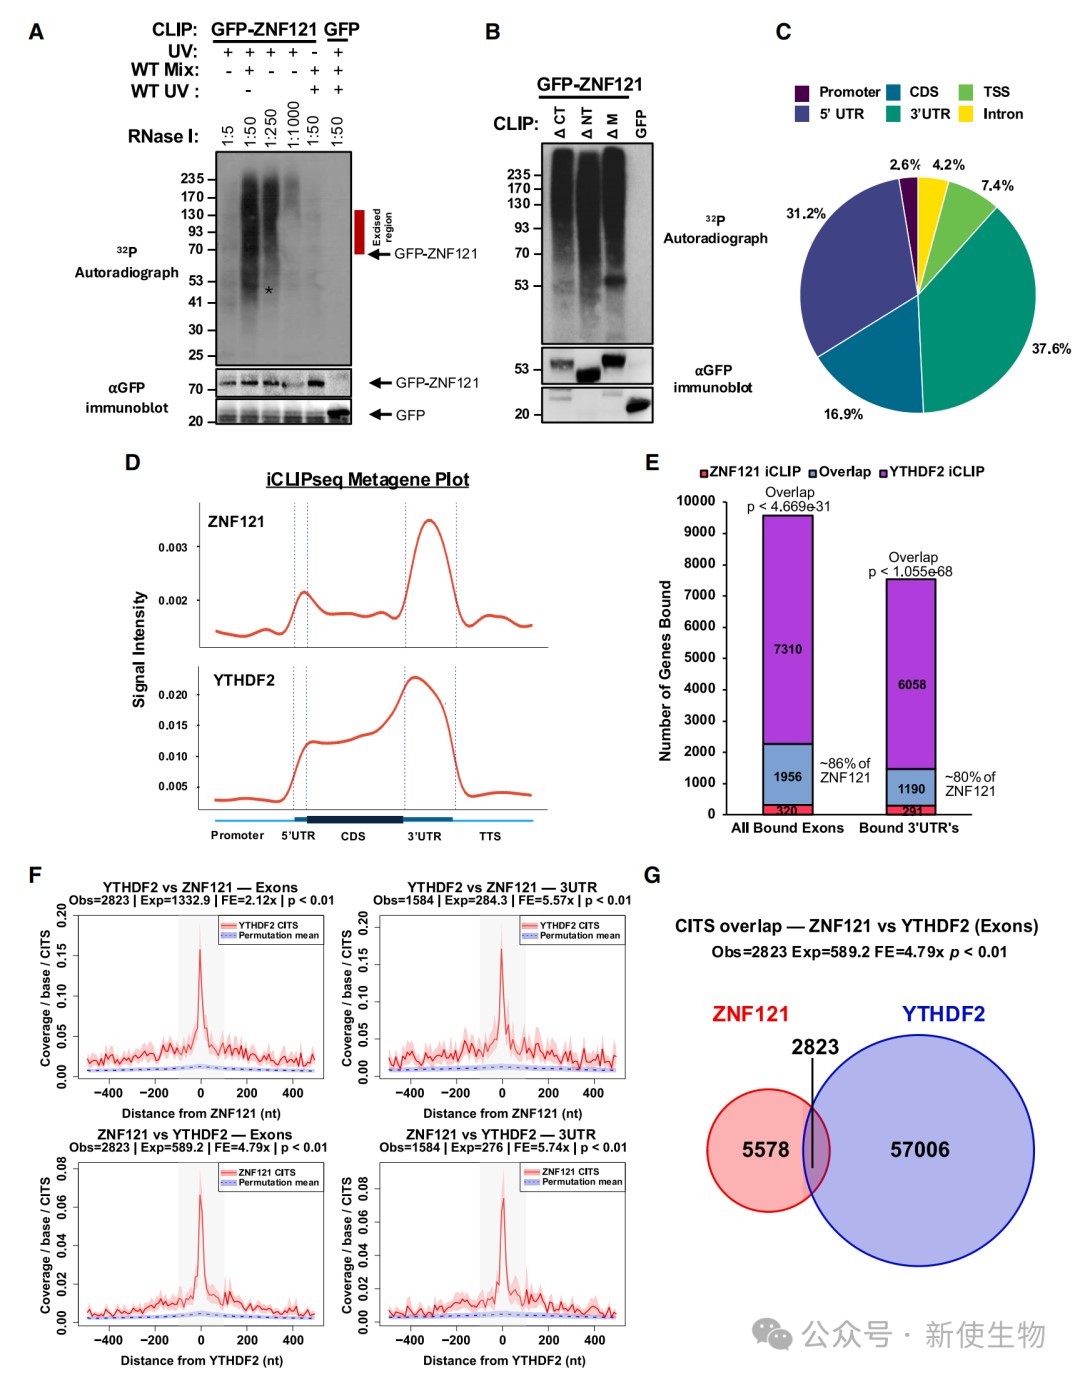
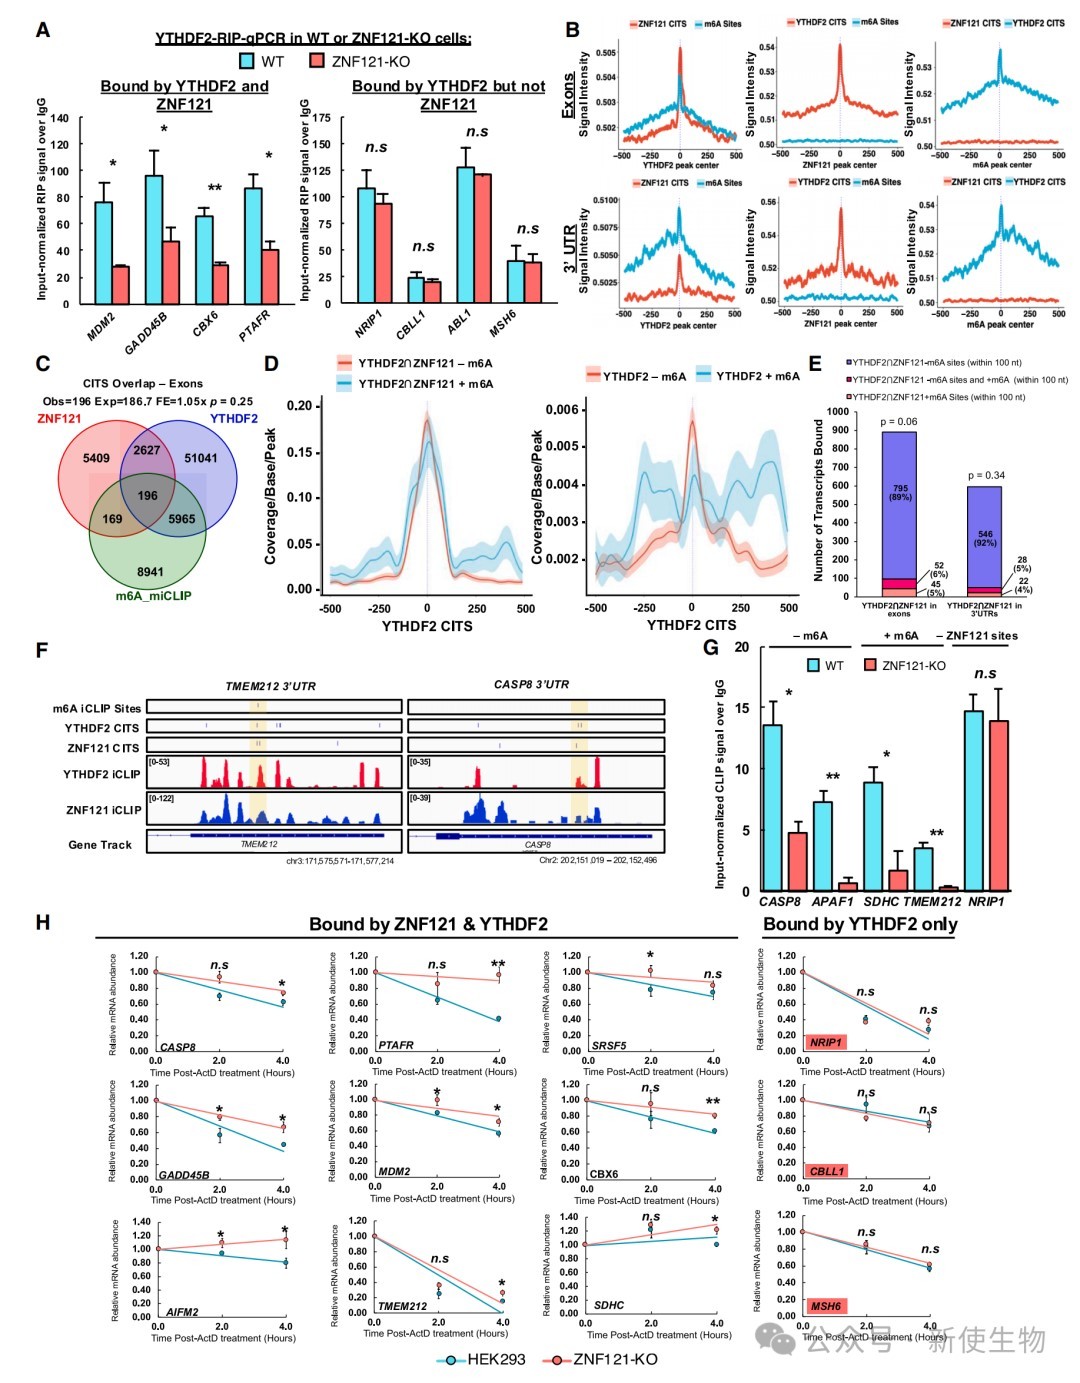
通过iCLIPseq技术,研究证实ZNF121直接结合mRNA,且其结合位点主要富集在3' UTR区域。
分析显示,ZNF121与YTHDF2的结合位点在全转录组范围内高度重合,且约80%的ZNF121结合靶标同时也是YTHDF2的靶标。
四、ZNF121敲除导致结合靶标的mRNA丰度发生改变
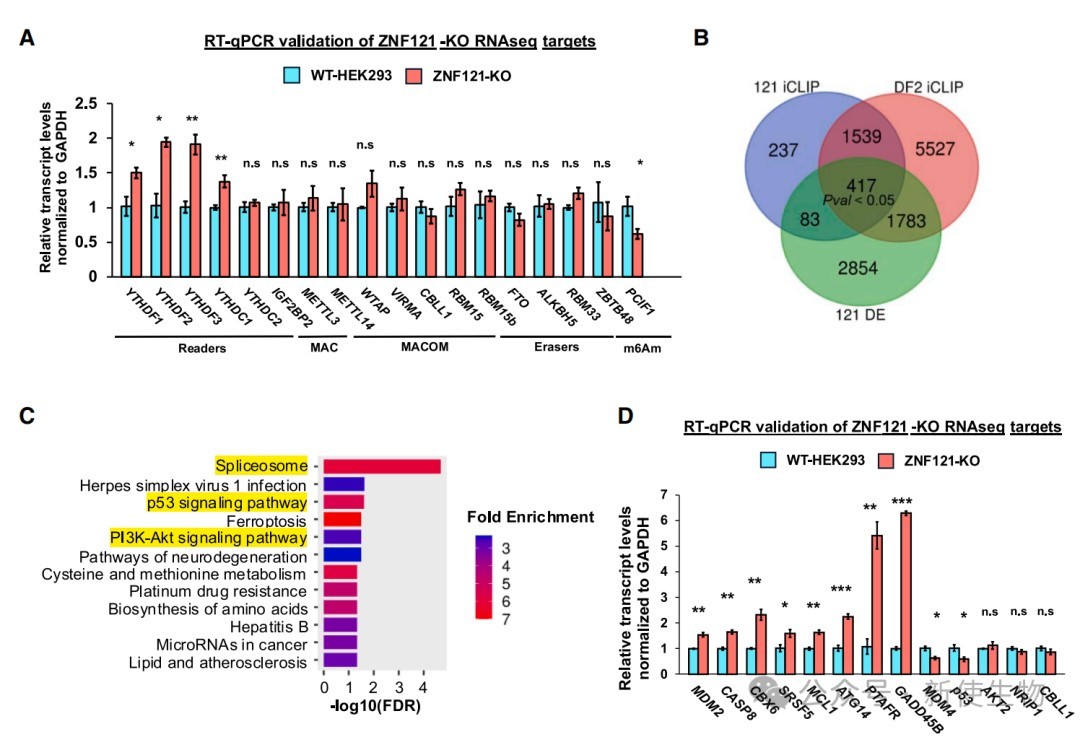
利用CRISPR/Cas9构建ZNF121敲除(KO)细胞系并进行RNA-seq,研究发现ZNF121缺失导致大量基因表达发生显著变化。
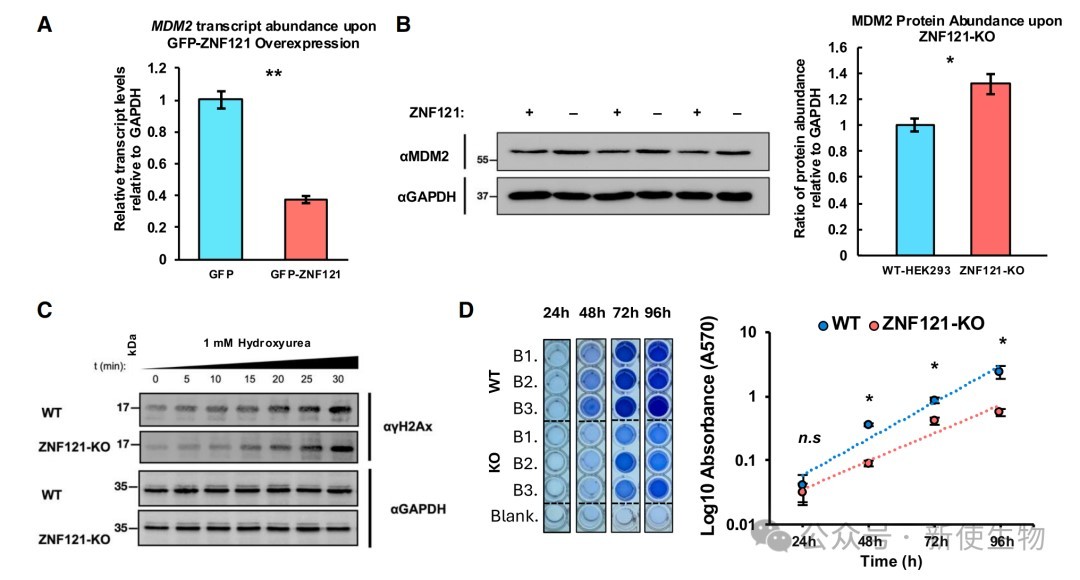
基因集富集分析显示,受影响的靶标主要富集在细胞周期、剪接体及PI3K-AKT信号通路中,其中MDM2等癌基因的表达水平显著升高。
五、ZNF121对YTHDF2结合共享靶标至关重要
通过RIP-qPCR和CLIP-qPCR发现,ZNF121敲除显著削弱YTHDF2与共有靶mRNA的结合,结合iCLIP-seq、miCLIP-seq及GLORI-seq分析发现,近90%的共结合区域不存在邻近m⁶A修饰。
进一步通过ActD转录抑制实验和Poly(A)尾长度分析发现,ZNF121缺失延长靶mRNA半衰期及Poly(A)尾长度,且其通过结合PAN2协同YTHDF2促进mRNA降解。
六、ZNF121介导的MDM2 mRNA降解影响DNA损伤反应与细胞活力
敲除ZNF121引起MDM2 mRNA衰变减缓及MDM2蛋白表达量显著增加,这导致在羟基脲(HU)诱导DNA损伤时,γH2A.X的初始化激活被显著抑制且响应时间延迟。
结晶紫细胞活力实验表明,ZNF121 KO显著减缓了细胞生长速率,揭示了该轴线在细胞周期控制与肿瘤发生中的潜能。
总结
本研究鉴定出C2H2锌指蛋白ZNF121是YTHDF2的新型辅助因子,它在细胞质中招募YTHDF2结合到众多mRNA上并促进它们的降解。这一过程广泛独立于m⁶A修饰,不仅拓展了对YTHDF2功能的认识,也揭示了ZNF121在控制细胞生长和DNA损伤响应中的关键作用。
新使生物专业翻译组学技术平台
新使生物NeoRibo长期专注于翻译组学技术研发与应用,已构建覆盖核糖体翻译、tRNA解码、RNA修饰及Poly(A)尾调控等多个层面的技术体系,提供从整体翻译活性、基因翻译效率到密码子分辨率翻译行为的系统解决方案,全面解析转录后及翻译过程中的精细调控机制。
GLORI-seq 2.0/3.0 (m⁶A单碱基绝对定量检测)
新使生物专业翻译组一站式服务平台 产品名称 